Gli RNA circolari sono molecole di RNA caratterizzate da una struttura covalentemente chiusa ad anello, nella quale le estremità 5′ e 3′, tipiche degli RNA lineari, sono unite tra loro. Indicati comunemente come circRNA (circular RNA), costituiscono una classe di RNA particolarmente interessante per la biologia molecolare, poiché possono presentare elevata stabilità e specifiche funzioni regolatorie all’interno delle cellule.
La presenza di RNA circolari è nota da diversi decenni. Nel 1976 fu osservato che alcuni patogeni delle piante, i viroidi, sono costituiti da piccole molecole di RNA circolare, chiuse e continue. Per molto tempo, tuttavia, le forme circolari di RNA presenti nelle cellule degli organismi superiori furono considerate soprattutto prodotti anomali o poco rilevanti dello splicing.
La prospettiva cambiò profondamente tra il 2012 e il 2013, quando l’impiego del sequenziamento di nuova generazione (NGS), associato a strumenti bioinformatici sempre più potenti, permise di identificare e caratterizzare un numero molto maggiore di circRNA. Queste ricerche mostrarono che gli RNA circolari sono ampiamente presenti nelle cellule e conservati in numerose specie, suggerendo un ruolo biologico più importante di quanto precedentemente ritenuto.
Oggi i circRNA sono studiati come regolatori dell’espressione genica, come molecole capaci di interagire con microRNA e proteine e, in alcuni casi, anche per la loro potenziale capacità di essere tradotti in proteine. La loro stabilità e la loro presenza in diversi tessuti e fluidi biologici hanno inoltre suscitato interesse per possibili applicazioni diagnostiche e terapeutiche.
Comprendere come si formano, quali funzioni svolgono e come sono regolati permette quindi di approfondire un settore emergente della biologia molecolare e della medicina molecolare.
Struttura degli RNA circolari
Gli RNA circolari sono caratterizzati da una struttura covalentemente chiusa ad anello, che li distingue dagli RNA lineari e priva la molecola delle classiche estremità libere 5′ e 3′. Questa particolare configurazione è alla base di molte delle loro proprietà biologiche, tra cui la maggiore resistenza ad alcuni meccanismi di degradazione.
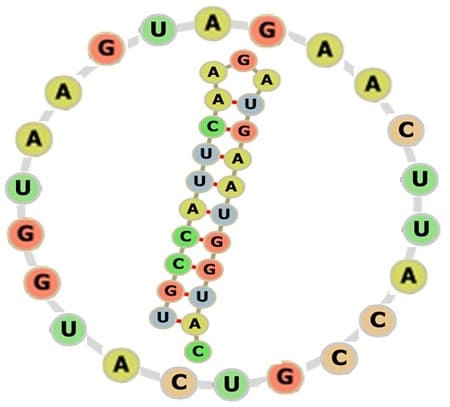
struttura degli RNA circolari
Nella maggior parte degli RNA circolari, la circolarizzazione avviene quando il gruppo fosfato associato al carbonio 5′ di un nucleotide si unisce al gruppo ossidrile (-OH) legato al carbonio 3′ di un altro nucleotide, formando un legame fosfodiesterico covalente. Questo legame unisce le due estremità della molecola e determina la chiusura dell’anello.
È opportuno precisare che, nei circRNA biologici, il legame che caratterizza il punto di giunzione è generalmente un legame fosfodiesterico 3′-5′, analogo a quelli presenti lungo la catena degli RNA lineari. Il riferimento a un gruppo ossidrile in posizione 2′ può riguardare particolari forme di RNA circolare o specifiche modalità di ciclizzazione, ma non rappresenta il meccanismo canonico dei circRNA cellulari.
La struttura circolare non implica necessariamente una forma geometrica perfettamente regolare: la molecola può ripiegarsi nello spazio formando strutture secondarie e conformazioni tridimensionali determinate dalla sequenza nucleotidica e dalle interazioni tra le basi. Questi ripiegamenti possono influenzarne la stabilità e le interazioni con altre molecole cellulari.
Come si formano gli RNA circolari
Gli RNA circolari si formano principalmente attraverso un processo di splicing non canonico chiamato back-splicing (o splicing inverso). A differenza dello splicing canonico, che collega le sequenze di RNA secondo il normale ordine lineare, il back-splicing determina la formazione di un legame tra un sito di splicing a valle e uno situato a monte, generando una giunzione circolare.
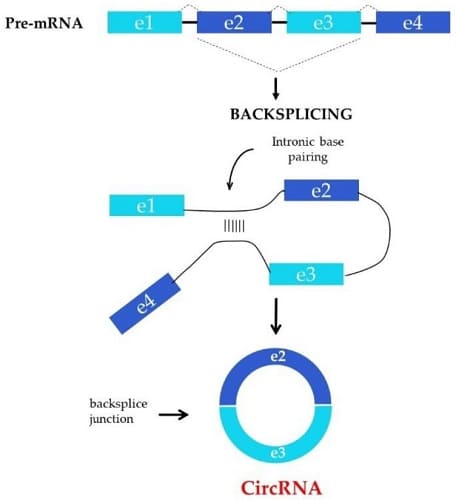
formazione
Il processo avviene generalmente durante la maturazione del pre-mRNA, trascritto dalla RNA polimerasi II a partire dal DNA. Il pre-mRNA contiene esoni e introni, che sono sottoposti a specifici processi di elaborazione. Nel back-splicing, il ripiegamento della molecola e l’avvicinamento di regioni inizialmente distanti consentono allo spliceosoma di collegare un sito donatore di splicing al 5′, posto a valle, con un sito accettore al 3′, posto a monte.
Questa particolare modalità di giunzione produce un anello di RNA covalentemente chiuso, mentre le sequenze rimanenti del trascritto possono proseguire verso una maturazione lineare. Il back-splicing è generalmente meno frequente dello splicing canonico e la sua efficienza dipende da specifici elementi di sequenza e da fattori regolatori.
Accoppiamento mediato dagli introni
Un primo meccanismo di circolarizzazione è basato sulla presenza, negli introni che fiancheggiano gli esoni destinati a diventare circolari, di sequenze ripetute invertite. Nell’uomo e in altri primati, un ruolo importante può essere svolto dalla sequenza Alu, caratterizzata come sito di taglio riconosciuto dall’endonucleasi Alu, un enzima di restrizione quando sono orientati e posizionati in modo da favorire l’appaiamento.
Le sequenze complementari possono appaiarsi tra loro, formando una struttura a doppio filamento di RNA che avvicina i siti di splicing e facilita il back-splicing. Questo meccanismo è particolarmente rilevante per numerosi circRNA esonici.
Accoppiamento mediato da proteine
Un secondo meccanismo coinvolge specifiche proteine leganti l’RNA (RBP, RNA-binding proteins), capaci di riconoscere sequenze presenti negli introni e di favorire il ripiegamento del trascritto.
Tra gli esempi studiati vi sono Muscleblind (MBL) e Quaking (QKI). Queste proteine possono contribuire ad avvicinare le regioni introniche attraverso il legame a più siti o mediante interazioni tra proteine, favorendo la circolarizzazione degli esoni. Il loro ruolo, tuttavia, è specifico del contesto cellulare e del trascritto: non tutti i circRNA dipendono dagli stessi fattori.
Classificazione degli RNA circolari
Si possono classificare gli RNA circolari in base alle sequenze che costituiscono la loro struttura ad anello e alla loro origine durante la maturazione dell’RNA. Le tre categorie principali sono circRNA esonici, circRNA intronici e circRNA esone-introne, che si distinguono per composizione, localizzazione cellulare e funzioni biologiche.
circRNA esonici (EcircRNA)
Gli RNA circolari esonici, indicati come EcircRNA (exonic circular RNA), sono costituiti esclusivamente da uno o più esoni. Rappresentano la categoria più studiata e, secondo numerose analisi, la più abbondante tra i circRNA identificati nelle cellule dei mammiferi.
Gli EcircRNA si localizzano prevalentemente nel citoplasma, sebbene alcuni possano essere presenti anche nel nucleo. Nel citoplasma possono interagire con microRNA, proteine e altri RNA, partecipando alla regolazione dell’espressione genica. Alcuni circRNA esonici possono inoltre essere tradotti in proteine in condizioni specifiche.
circRNA intronici (ciRNA)
I circRNA intronici, chiamati ciRNA (circular intronic RNA), sono formati principalmente da sequenze introniche. Derivano da particolari intermedi di splicing, spesso associati a strutture a laccio (lariat), che acquisiscono caratteristiche tali da consentirne la permanenza in forma circolare.
A differenza di molti circRNA esonici, i ciRNA si localizzano prevalentemente nel nucleo, dove possono contribuire alla regolazione dell’espressione genica. Alcuni ciRNA sono stati associati alla modulazione della trascrizione di geni vicini, anche se i meccanismi specifici dipendono dalla singola molecola.
circRNA esone-introne (EIciRNA)
I circRNA esone-introne, indicati come EIciRNA (exon-intron circular RNA), contengono uno o più esoni associati a sequenze introniche. Si formano quando alcune sequenze introniche non sono rimosse durante il processo che porta alla circolarizzazione.
Gli EIciRNA si trovano prevalentemente nel nucleo e possono interagire con componenti della macchina trascrizionale, contribuendo alla regolazione dell’espressione di determinati geni. In particolare, alcuni studi hanno evidenziato la loro capacità di favorire la trascrizione dei geni da cui originano, attraverso interazioni con il macchinario trascrizionale.
Tabella riassuntiva: tipi di RNA circolari
| Categoria | Composizione | Localizzazione prevalente |
| EcircRNA | Solo esoni | Citoplasma |
| CircRNA | Sequenze introniche | Nucleo |
| EIciRNA | Esoni e introni | nucleo |
Principali meccanismi di degradazione
La ricerca ha identificato diverse vie attraverso cui i circRNA possono essere eliminati o ridotti. Questi meccanismi non sono necessariamente alternativi: possono agire in contesti diversi e la loro importanza varia in base al circRNA.
-
Degradazione mediata da microRNA e AGO2
Alcuni circRNA possono essere riconosciuti da microRNA (miRNA) che presentano una complementarità molto elevata con specifiche sequenze della molecola. In questi casi, il miRNA può guidare la proteina Argonaute 2 (AGO2), componente del complesso RISC, verso il circRNA.
Un esempio ben studiato è miR-671, che può guidare il taglio AGO2-dipendente del circRNA CDR1as. Il taglio rompe la struttura circolare e genera un RNA lineare, che può essere ulteriormente degradato da altre nucleasi. Si tratta però di un meccanismo specifico di determinati circRNA, non di una via generale per tutti gli RNA circolari.
-
Degradazione mediata dalla RNasi L
In condizioni di infezione virale o di attivazione della risposta immunitaria innata, l’enzima RNasi L può degradare numerosi circRNA in modo rapido e diffuso. Questa endonucleasi taglia l’RNA all’interno della catena, superando la protezione offerta dalla struttura circolare.
La degradazione degli RNA circolari da parte della RNasi L è stata collegata alla regolazione della risposta cellulare agli RNA a doppio filamento e all’attività di PKR, una proteina chinasi coinvolta nella risposta antivirale. Non si tratta quindi di un meccanismo di “smaltimento ordinario” necessariamente attivo in ogni cellula, ma di una via particolarmente rilevante in specifiche condizioni di stress e infezione.
-
Degradazione mediata dalla modifica m⁶A
Alcuni circRNA contengono la modifica chimica m⁶A (N⁶-metiladenosina), che può contribuire alla regolazione della loro stabilità. In determinate condizioni, la proteina YTHDF2, che riconosce questa modifica, interagisce con l’adattatore HRSP12, favorendo il reclutamento del complesso RNasi P/MRP.
Questo complesso può effettuare un taglio endonucleolitico sul circRNA, aprendo l’anello e consentendo la successiva degradazione dei frammenti. È importante precisare che non tutti i circRNA possiedono modifiche m⁶A rilevanti per questo processo, quindi anche questa è una via selettiva e non universale.
-
Degradazione dipendente dalla struttura dell’RNA
La conformazione tridimensionale e le strutture secondarie dei circRNA possono influenzarne la stabilità. Alcuni circRNA altamente strutturati possono essere riconosciuti da proteine come UPF1 e G3BP1, coinvolte in una via definita structure-mediated RNA decay.
Queste proteine possono legarsi a regioni particolarmente strutturate e favorire la degradazione della molecola. Il meccanismo mostra che la stabilità di un circRNA non dipende soltanto dalla sua forma circolare, ma anche dalla sequenza nucleotidica e dal ripiegamento nello spazio.
-
Esportazione tramite vescicole extracellulari
I circRNA possono anche essere selezionati e trasferiti all’esterno della cellula attraverso vescicole extracellulari, comprese quelle comunemente chiamate esosomi. Questo processo non corrisponde necessariamente a una degradazione enzimatica: rappresenta piuttosto una modalità di rimozione, distribuzione o comunicazione intercellulare.
Una volta rilasciati, i circRNA possono essere trasportati verso altre cellule e, in alcuni casi, influenzarne le funzioni. Per questo motivo, l’esportazione tramite vescicole extracellulari è interessante sia per la biologia cellulare sia per lo studio dei circRNA come possibili biomarcatori.
Il ruolo della divisione cellulare
La divisione cellulare può influenzare la quantità di RNA circolari presente in una cellula, ma non è corretto definirla un vero meccanismo di degradazione. Quando una cellula si divide, i circRNA preesistenti possono essere distribuiti tra le cellule figlie, determinando una diluizione della loro concentrazione, soprattutto se la loro sintesi non compensa questa ripartizione.
Questo fenomeno è particolarmente rilevante per comprendere perché i circRNA possano accumularsi nelle cellule non proliferanti o a lunga vita, mentre nelle cellule in rapida divisione la loro concentrazione può essere influenzata dalla diluizione durante la proliferazione.
Funzioni biologiche degli RNA circolari
Gli RNA circolari svolgono funzioni biologiche diverse e dipendenti dal contesto cellulare, contribuendo alla regolazione dell’espressione genica, dell’attività delle proteine e, in alcuni casi, della sintesi proteica. La loro azione è legata alla sequenza nucleotidica, alla struttura tridimensionale e alla localizzazione nella cellula. Sebbene molti RNA circolari siano stati studiati per il loro ruolo regolatorio, non tutti possiedono le stesse attività e alcune funzioni rimangono ancora oggetto di ricerca.
Regolazione dei microRNA
Una delle funzioni più conosciute degli RNA circolari è la capacità di interagire con i microRNA (miRNA), piccole molecole di RNA coinvolte nel controllo dell’espressione genica. Alcuni circRNA contengono sequenze complementari a specifici miRNA e possono legarli, riducendone la disponibilità a interagire con i rispettivi RNA bersaglio.
Questo meccanismo è spesso descritto con l’espressione “spugna di microRNA” (miRNA sponge). In determinate condizioni, il circRNA può quindi attenuare l’azione di un miRNA e influenzare indirettamente la quantità di alcune proteine prodotte dalla cellula.
Un esempio noto è CDR1as, chiamato anche ciRS-7, che contiene numerosi siti di legame per miR-7 ed è stato studiato soprattutto nel tessuto nervoso. È importante, tuttavia, non generalizzare: non tutti i circRNA funzionano da spugne efficaci, e l’importanza biologica di queste interazioni dipende dalla quantità relativa delle molecole e dalla loro affinità di legame.
Interazione con le proteine
Gli RNA circolari possono interagire con numerose proteine leganti l’RNA (RBP) e con altri componenti cellulari. In base alla loro struttura e alle sequenze presenti, possono agire come molecole esca (decoy), scaffold molecolari o reclutatori, modificando la localizzazione, la stabilità o l’attività delle proteine con cui interagiscono.
Queste interazioni possono influenzare processi come la trascrizione, lo splicing, la progressione del ciclo cellulare e le risposte allo stress. Per esempio, alcuni circRNA possono sequestrare una proteina, impedendole di interagire con i suoi bersagli abituali; altri possono invece favorire l’assemblaggio di complessi molecolari.
Regolazione della trascrizione e dello splicing
Alcuni RNA circolari, soprattutto quelli presenti nel nucleo, partecipano alla regolazione dell’espressione genica. Possono interagire con il DNA, con l’RNA nascente o con componenti della macchina trascrizionale, influenzando l’attività di determinati geni.
Gli EIciRNA, per esempio, sono stati associati alla regolazione della trascrizione dei geni da cui derivano attraverso interazioni con U1 snRNP e RNA polimerasi II. Altri circRNA possono influenzare lo splicing alternativo, interagendo con fattori di splicing o competendo con trascritti e siti di maturazione dell’RNA.
Questi meccanismi mostrano che i circRNA non agiscono soltanto nel citoplasma, ma possono svolgere un ruolo anche all’interno del nucleo, durante la regolazione dell’informazione genetica.
Possibile traduzione in proteine
Per molto tempo, gli RNA circolari sono stati considerati esclusivamente RNA non codificanti. Oggi è noto che una parte dei circRNA può essere tradotta in peptidi o proteine, anche se questa capacità non è comune a tutti i membri della classe.
A differenza degli mRNA lineari, i circRNA non possiedono normalmente un cappuccio 5′ (5′ cap) e una coda poli(A). Alcuni, tuttavia, possono avviare la traduzione attraverso meccanismi cap-independent, che comprendono l’impiego di IRES (Internal Ribosome Entry Sites) o di modifiche come m⁶A, capaci di favorire il reclutamento dei ribosomi.
Le proteine prodotte possono avere funzioni biologiche specifiche e ampliano il significato dei circRNA, che non devono quindi essere considerati necessariamente semplici molecole regolatrici non codificanti.
Partecipazione ai processi cellulari
Attraverso queste diverse modalità d’azione, i circRNA possono contribuire alla regolazione di numerosi processi, tra cui sviluppo e differenziamento cellulare, proliferazione, apoptosi, risposta allo stress e comunicazione intercellulare. Sono stati inoltre associati a processi come angiogenesi, risposta immunitaria e adattamento all’ipossia.
È però importante distinguere tra presenza di un circRNA in un processo biologico e dimostrazione di un suo ruolo causale: in molti casi, la ricerca sta ancora chiarendo se le variazioni della sua espressione siano direttamente responsabili di un effetto cellulare o rappresentino una conseguenza di altri cambiamenti.
RNA circolari come biomarcatori
Gli RNA circolari sono considerati promettenti biomarcatori perché presentano caratteristiche che ne favoriscono il rilevamento e la misurazione nei campioni biologici. La loro elevata stabilità, dovuta alla struttura covalentemente chiusa, li rende relativamente resistenti alla degradazione e consente di rilevarli anche in condizioni nelle quali gli RNA lineari vengono rapidamente degradati.
I circRNA possono essere individuati in diversi tessuti e fluidi biologici, tra cui sangue, plasma, siero, saliva e urine. Possono inoltre essere trasportati all’interno di vescicole extracellulari, contribuendo alla loro protezione e alla comunicazione tra cellule. La loro presenza in questi campioni accessibili rende i circRNA particolarmente interessanti per lo sviluppo di biomarcatori non invasivi.
In diverse patologie sono state osservate variazioni nella quantità di specifici circRNA. In particolare, sono oggetto di studio come possibili biomarcatori per tumori, malattie cardiovascolari e patologie neurologiche, nei quali potrebbero fornire informazioni utili per la diagnosi, la prognosi o il monitoraggio della risposta al trattamento.
Tuttavia, la maggior parte di queste applicazioni è ancora in fase di ricerca. Sono necessari studi clinici più ampi e standardizzati per stabilire l’affidabilità dei circRNA come biomarcatori e per determinarne il reale valore diagnostico.
Limiti
Nonostante le prospettive interessanti, l’impiego clinico dei circRNA presenta ancora diverse difficoltà. Le quantità di alcuni circRNA possono variare in funzione del tessuto, dell’età, delle condizioni fisiologiche e delle modalità di raccolta e conservazione dei campioni. Inoltre, mancano ancora protocolli completamente standardizzati per l’estrazione, la quantificazione e l’identificazione di queste molecole.
Un ulteriore limite riguarda la necessità di distinguere con precisione i circRNA dagli RNA lineari che condividono sequenze simili. Sono quindi necessari metodi analitici altamente specifici e studi clinici condotti su popolazioni ampie e indipendenti per verificare sensibilità, specificità e riproducibilità dei potenziali biomarcatori.
Prospettive future
La ricerca sui circRNA potrebbe portare allo sviluppo di nuove strategie diagnostiche basate su campioni biologici facilmente accessibili, contribuendo alla medicina personalizzata. La combinazione del sequenziamento di nuova generazione con strumenti bioinformatici sempre più avanzati potrebbe permettere di identificare profili di circRNA associati a specifiche condizioni patologiche.
In futuro, pannelli costituiti da più circRNA potrebbero essere studiati per migliorare la capacità di distinguere diverse malattie o sottotipi della stessa patologia. Parallelamente, la comprensione dei meccanismi che regolano la loro produzione e degradazione potrebbe favorire lo sviluppo di nuove applicazioni terapeutiche. Tuttavia, il passaggio dalla ricerca sperimentale all’impiego clinico richiederà ulteriori studi per stabilire affidabilità, sicurezza e utilità clinica di queste molecole.

