Le immunotossine sono molecole progettate per riconoscere selettivamente determinate cellule e danneggiarle attraverso l’azione di una tossina. Sono costituite, in genere, da una componente capace di legarsi a uno specifico bersaglio cellulare e da una componente tossica che, una volta raggiunto l’interno della cellula, ne compromette le funzioni vitali.
Questa strategia nasce dall’idea di combinare la specificità del riconoscimento immunologico con l’elevata potenza delle tossine, allo scopo di colpire cellule patologiche limitando, per quanto possibile, il danno ai tessuti sani. La componente di riconoscimento può essere rappresentata da un anticorpo o da un suo frammento, mentre la parte tossica deriva spesso da tossine di origine batterica o vegetale, opportunamente modificate per essere utilizzate in ambito terapeutico.
Le immunotossine sono state studiate soprattutto come strumenti di terapia antitumorale mirata, in particolare contro alcune neoplasie che esprimono specifici antigeni sulla superficie cellulare. La loro applicazione presenta tuttavia diverse difficoltà, legate all’immunogenicità, alla distribuzione nei tessuti e alla possibilità di effetti indesiderati. Per questo motivo, la ricerca è orientata allo sviluppo di molecole sempre più selettive, sicure e adatte a differenti bersagli terapeutici.
Struttura e componenti delle immunotossine
Nelle immunotossine, l’efficacia terapeutica deriva dalla combinazione di due componenti funzionalmente distinte: un dominio di riconoscimento, che individua la cellula bersaglio, e un dominio tossico, responsabile del danno cellulare. Questa particolare struttura permette di indirizzare una potente attività citotossica verso cellule che esprimono determinati antigeni o recettori, cercando di limitare l’esposizione dei tessuti sani.
La selettività, tuttavia, non è assoluta. Se l’antigene utilizzato come bersaglio è presente anche su cellule sane, queste possono essere coinvolte nell’azione dell’immunotossina. Per questo motivo, la scelta del bersaglio rappresenta uno degli aspetti fondamentali nella progettazione di queste molecole.
Il dominio di riconoscimento
Il dominio di riconoscimento ha il compito di individuare e legarsi con elevata specificità a un antigene o a un recettore presente sulla superficie della cellula bersaglio. Questa componente non ha generalmente un’attività citotossica propria, ma consente all’immunotossina di concentrarsi sulle cellule che presentano il bersaglio desiderato.
Il dominio di riconoscimento può essere costituito da un anticorpo monoclonale intero oppure da un suo frammento. Gli anticorpi completi, spesso appartenenti alla classe delle IgG, possiedono una struttura caratteristica a Y e hanno una massa molecolare di circa 150 kDa. Le loro dimensioni relativamente elevate possono però influenzare la distribuzione e la penetrazione nei tessuti.
Per ottenere molecole più piccole possono essere utilizzati frammenti anticorpali, tra cui i frammenti Fab e gli scFv (single-chain variable fragments). Il frammento Fab conserva la capacità di riconoscere l’antigene, mentre lo scFv è costituito dalle regioni variabili delle catene pesante e leggera dell’anticorpo, indicate rispettivamente come Vₕ e Vₗ, unite da un breve legame peptidico. Le dimensioni ridotte degli scFv possono favorire la diffusione nei tessuti e li rendono particolarmente utili nella progettazione di immunotossine ricombinanti.
Il dominio tossico
Il dominio tossico rappresenta il componente responsabile dell’attività citotossica. Nelle immunotossine classiche sono utilizzate tossine di origine biologica, prodotte da batteri o piante, caratterizzate da un’elevata potenza.
Tra quelle impiegate nella progettazione di immunotossine vi sono la tossina difterica, prodotta da Corynebacterium diphtheriae, e la tossina di Pseudomonas, prodotta da Pseudomonas aeruginosa. È stata inoltre studiata la ricina, una tossina di origine vegetale derivata dai semi di Ricinus communis.
Nelle immunotossine ricombinanti, le componenti responsabili del riconoscimento indiscriminato delle cellule vengono generalmente eliminate o inattivate, mentre viene conservata la porzione necessaria all’attività citotossica. In questo modo, il riconoscimento della cellula bersaglio viene affidato al dominio anticorpale o a un altro ligando specifico.
Come le due componenti agiscono insieme
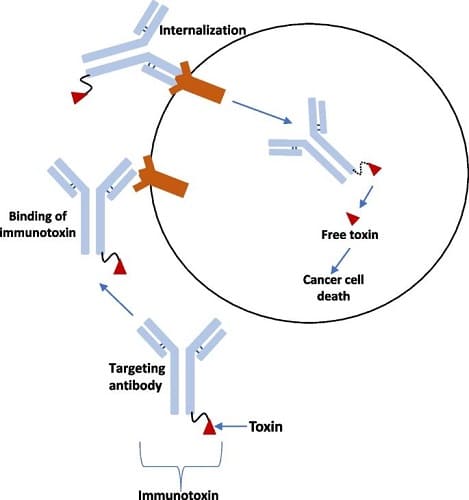
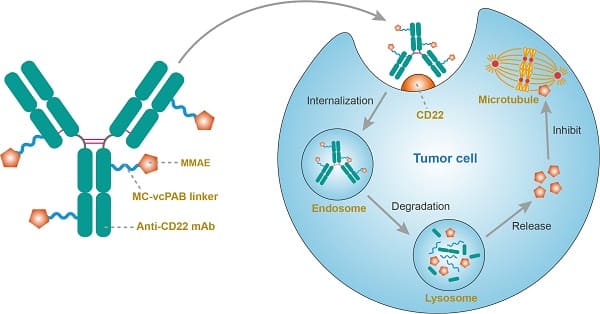
Il funzionamento dell’immunotossina può essere descritto attraverso una sequenza di eventi. Il dominio di riconoscimento si lega innanzitutto all’antigene presente sulla superficie della cellula bersaglio. Questo legame può favorire l’internalizzazione dell’immunotossina mediante endocitosi, permettendole di entrare nella cellula all’interno di una vescicola.
Una volta internalizzata, la molecola deve raggiungere il compartimento cellulare appropriato. A seconda della tossina utilizzata, il dominio tossico può essere sottoposto a specifici processi di taglio, traslocazione e rilascio nel citoplasma. Una volta raggiunto il proprio bersaglio intracellulare, può interferire con funzioni essenziali della cellula.
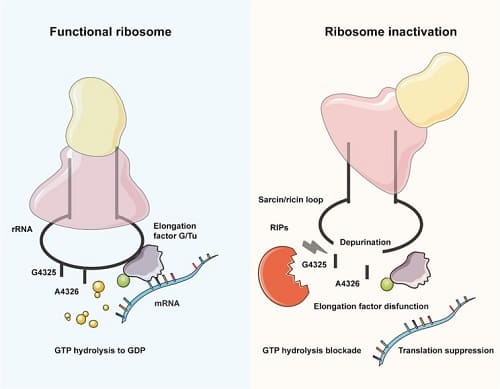
Molte delle tossine utilizzate nelle immunotossine inibiscono la sintesi proteica, interferendo con i meccanismi della traduzione. Il progressivo blocco della produzione proteica compromette le funzioni cellulari e può condurre alla morte della cellula bersaglio.
Il percorso non è comunque identico per tutte le immunotossine: il tipo di riconoscimento, l’internalizzazione, il traffico intracellulare e il meccanismo con cui la tossina raggiunge il proprio bersaglio dipendono dalla specifica molecola utilizzata.
Meccanismo d’azione delle immunotossine
Il meccanismo d’azione delle immunotossine comprende generalmente quattro fasi: il riconoscimento della cellula bersaglio, l’internalizzazione attraverso endocitosi, il traffico intracellulare e il rilascio della componente tossica, seguito dall’azione citotossica. Il percorso preciso può però variare in funzione del bersaglio cellulare e della tossina utilizzata.
-
Il legame al bersaglio
Il processo inizia quando il dominio di riconoscimento dell’immunotossina si lega a un antigene o a un recettore presente sulla superficie della cellula bersaglio. Il riconoscimento può coinvolgere, per esempio, antigeni come CD22 o CD19, particolarmente studiati in alcune neoplasie delle cellule B.
L’efficacia di questa fase dipende dall’affinità e dalla specificità del legame. L’immunotossina deve infatti riconoscere il bersaglio con sufficiente stabilità, ma la distribuzione dell’antigene nell’organismo e la sua densità sulla superficie cellulare influenzano anch’esse la capacità della molecola di raggiungere le cellule interessate.
-
L’internalizzazione
Meccanismo d’azione delle immunotossine
Dopo il legame con il bersaglio, l’immunotossina può essere internalizzata attraverso un processo di endocitosi, spesso mediato dal recettore a cui si è legata. La membrana cellulare si invagina e forma una vescicola che contiene il complesso antigene-immunotossina.
L’immunotossina entra quindi nel sistema endosomiale, costituito da compartimenti intracellulari caratterizzati da condizioni chimiche progressivamente diverse. Questo passaggio è fondamentale perché, per molte immunotossine, la semplice presenza sulla superficie cellulare non è sufficiente: la componente tossica deve raggiungere il compartimento intracellulare nel quale può esercitare la propria attività.
Una parte delle molecole può tuttavia essere indirizzata verso i lisosomi e degradata. L’efficienza dell’internalizzazione e la capacità di evitare una degradazione prematura rappresentano quindi fattori importanti per l’efficacia della terapia.
-
Traffico intracellulare e rilascio della tossina
Una volta internalizzata, l’immunotossina deve attraversare una serie di compartimenti cellulari prima che la componente tossica raggiunga il proprio bersaglio intracellulare. Il percorso dipende dalla particolare tossina e dalla struttura dell’immunotossina.
Alcune tossine batteriche, come quelle derivate dalla tossina di Pseudomonas aeruginosa, possono utilizzare un percorso che coinvolge gli endosomi, l’apparato di Golgi e il reticolo endoplasmatico. In alcune immunotossine ricombinanti sono state mantenute o introdotte sequenze che favoriscono il traffico verso questi compartimenti. Dal reticolo endoplasmatico, la componente tossica può successivamente raggiungere il citoplasma attraverso processi di traslocazione.
Altre tossine seguono invece percorsi differenti. La ricina, per esempio, può essere trasportata attraverso il sistema endomembranoso fino al reticolo endoplasmatico, dove la componente catalitica può essere liberata e successivamente raggiungere il citoplasma.
Il superamento delle membrane intracellulari rappresenta una delle principali difficoltà nella progettazione delle immunotossine. La molecola deve infatti raggiungere il citoplasma prima di essere completamente degradata nei compartimenti endosomiali o lisosomiali.
-
L’azione citotossica
Una volta raggiunto il citoplasma, il dominio tossico interferisce con processi cellulari essenziali. Molte delle tossine utilizzate nelle immunotossine colpiscono la sintesi proteica, ma lo fanno attraverso meccanismi molecolari differenti.
Le tossine derivate dalla tossina difterica o dalla tossina di Pseudomonas possono inattivare il fattore di allungamento EF-2 attraverso l’ADP-ribosilazione, impedendo la corretta progressione della traduzione. La conseguenza è un marcato blocco della sintesi proteica.
ribosome-inactivating proteins
La componente A della ricina, invece, appartiene alle proteine inattivanti i ribosomi, note come RIP (ribosome-inactivating proteins). Essa modifica una specifica regione dell’RNA ribosomiale 28S, compromettendo la funzione del ribosoma e impedendo la sintesi delle proteine.
Il danno provocato dalla tossina porta infine alla perdita della capacità della cellula di mantenere le proprie funzioni vitali. A seconda del tipo di tossina, della cellula bersaglio e delle condizioni biologiche, la morte cellulare può coinvolgere meccanismi differenti, tra cui l’apoptosi e altre forme di morte cellulare.
L’elevata potenza catalitica delle tossine è uno degli elementi che rendono le immunotossine particolarmente interessanti: la componente tossica può inattivare numerose molecole del proprio bersaglio intracellulare, amplificando l’effetto prodotto dall’ingresso anche di una quantità relativamente piccola di tossina nella cellula.
Principali tipologie di immunotossine
Le immunotossine si sono evolute nel tempo attraverso diverse generazioni tecnologiche, caratterizzate da cambiamenti nella struttura delle molecole, nelle modalità di produzione e nella capacità di limitare gli effetti indesiderati. Il passaggio dalle prime forme ottenute mediante coniugazione chimica alle moderne proteine ricombinanti ha permesso di aumentare progressivamente la specificità e il controllo delle loro proprietà farmacologiche.
La classificazione in generazioni non è completamente uniforme nella letteratura scientifica, ma può essere utilizzata per descrivere le principali tappe dello sviluppo di queste molecole.
Immunotossine di prima generazione
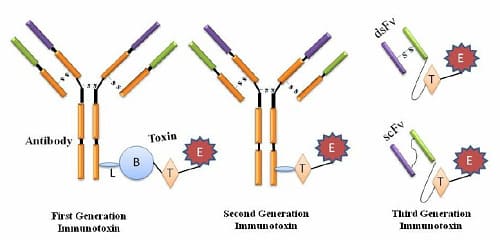
Le immunotossine di prima generazione furono sviluppate attraverso la combinazione diretta di anticorpi e tossine mediante coniugazione chimica. In genere venivano utilizzati anticorpi monoclonali interi, spesso di origine murina, collegati a tossine di origine batterica o vegetale.
Queste prime molecole presentavano diversi problemi. La componente tossica poteva conservare parti responsabili del suo naturale ingresso nelle cellule, aumentando il rischio di tossicità aspecifica. Inoltre, l’impiego di anticorpi murini poteva provocare una risposta immunitaria contro la molecola terapeutica. Anche l’eterogeneità dei prodotti ottenuti attraverso la coniugazione chimica rendeva difficile controllarne con precisione la struttura.
Immunotossine di seconda generazione
Le immunotossine di seconda generazione furono progettate per ridurre soprattutto la tossicità aspecifica delle prime molecole. Una delle strategie consisteva nell’utilizzare tossine private, mediante modificazioni chimiche o biologiche, delle regioni responsabili del loro legame naturale alle cellule.
tipi di immunotossine
Un esempio è rappresentato dall’impiego della catena A della ricina, che conserva l’attività enzimatica responsabile dell’inattivazione dei ribosomi ma non possiede la funzione di legame propria della tossina completa. Anche alcune tossine batteriche furono modificate per eliminare o ridurre le porzioni non necessarie all’attività citotossica.
Queste modifiche aumentavano la selettività rispetto alle tossine integre. Rimanevano tuttavia alcuni limiti, tra cui l’utilizzo frequente di anticorpi interi, le dimensioni relativamente elevate delle molecole e la presenza di una risposta immunitaria contro componenti di origine non umana.
Immunotossine di terza generazione
Un cambiamento fondamentale si verificò con lo sviluppo delle tecniche di ingegneria genetica e del DNA ricombinante. Le immunotossine potevano essere progettate come singole proteine di fusione, nelle quali il dominio responsabile del riconoscimento veniva codificato insieme alla componente tossica.
In queste molecole l’anticorpo intero poteva essere sostituito da frammenti anticorpali di piccole dimensioni, come gli scFv (single-chain variable fragments) o i dsFv (disulfide-stabilized variable fragments). La componente tossica veniva invece generalmente privata delle regioni necessarie al riconoscimento aspecifico delle cellule.
Il risultato era una molecola più compatta e definita dal punto di vista strutturale, con proprietà maggiormente controllabili rispetto ai precedenti coniugati chimici. Un esempio è rappresentato dal moxetumomab pasudotox, un’immunotossina ricombinante costituita da un frammento anticorpale diretto contro CD22 e da una forma modificata della tossina di Pseudomonas aeruginosa.
Strategie di nuova generazione
La ricerca più recente si concentra sul superamento di uno dei principali ostacoli delle immunotossine ricombinanti: la loro immunogenicità. Le componenti tossiche di origine batterica o vegetale possono infatti essere riconosciute dal sistema immunitario, inducendo la produzione di anticorpi contro il farmaco e riducendone l’efficacia dopo somministrazioni ripetute.
Una delle strategie consiste nella de-immunizzazione delle tossine, attraverso modifiche mirate delle sequenze proteiche che contengono epitopi riconoscibili dal sistema immunitario. L’obiettivo è ridurre la risposta immunitaria mantenendo, per quanto possibile, l’attività citotossica della molecola.
Un’altra linea di ricerca riguarda l’utilizzo di proteine di origine umana con attività citotossica, come alcune ribonucleasi, l’angiogenina o proteine coinvolte nei meccanismi naturali di morte cellulare. L’impiego di componenti umane può potenzialmente ridurre l’immunogenicità, anche se non elimina necessariamente ogni risposta immunitaria e presenta proprie difficoltà di progettazione.
L’evoluzione delle immunotossine segue quindi una direzione precisa: aumentare la specificità del riconoscimento, migliorare il controllo della struttura molecolare, ridurre la tossicità aspecifica e diminuire l’immunogenicità. Questi obiettivi guidano tuttora lo sviluppo di nuove molecole destinate alla terapia mirata.
Immunotossine e trattamento dei tumori
Le immunotossine sono state sviluppate come strumenti di terapia antitumorale mirata, con l’obiettivo di indirizzare una potente attività citotossica verso le cellule neoplastiche che esprimono specifici antigeni di superficie. A differenza dei farmaci citotossici tradizionali, che possono colpire numerose cellule dell’organismo caratterizzate da una rapida proliferazione, le immunotossine sfruttano un meccanismo di riconoscimento molecolare per concentrare la propria azione sulle cellule bersaglio.
I risultati ottenuti in ambito clinico sono stati tuttavia differenti a seconda del tipo di tumore. Le neoplasie ematologiche hanno rappresentato uno dei principali ambiti di sviluppo delle immunotossine, mentre nei tumori solidi sono emerse difficoltà legate alla distribuzione del farmaco, all’accessibilità del bersaglio e all’eterogeneità delle cellule tumorali.
Le applicazioni delle immunotossine nei tumori ematologici
Le cellule delle neoplasie ematologiche possono essere particolarmente accessibili alle molecole presenti nel circolo sanguigno. Inoltre, alcune leucemie e alcuni linfomi presentano antigeni di superficie caratteristici che possono essere sfruttati come bersagli terapeutici.
moxetumomab pasudotox
Un esempio importante è il moxetumomab pasudotox, un’immunotossina ricombinante diretta contro CD22, un antigene espresso dalle cellule B. La molecola associa un frammento anticorpale specifico per CD22 a una forma modificata della tossina di Pseudomonas aeruginosa. Il farmaco ha ottenuto negli Stati Uniti l’approvazione per il trattamento di adulti con leucemia a cellule capellute recidivante o refrattaria dopo almeno due precedenti terapie sistemiche. La commercializzazione negli Stati Uniti è stata successivamente interrotta e l’autorizzazione è stata ritirata nel 2024 per motivi commerciali.
Un’altra molecola che può essere citata nel contesto delle terapie basate sulla fusione tra un ligando e una tossina è il denileukin diftitox. In questo caso il dominio di riconoscimento non è un anticorpo, ma l’interleuchina-2 (IL-2), fusa a una forma modificata della tossina difterica. Il farmaco è stato sviluppato per il trattamento di alcune neoplasie delle cellule T e rappresenta quindi un esempio utile per comprendere come il principio delle immunotossine possa essere applicato anche utilizzando ligandi diversi dagli anticorpi.
Le difficoltà nei tumori solidi
L’applicazione delle immunotossine ai tumori solidi presenta numerosi ostacoli. La molecola deve infatti raggiungere le cellule tumorali attraversando il tessuto neoplastico e mantenere la propria attività fino a raggiungere il bersaglio.
Uno dei problemi è rappresentato dalla distribuzione all’interno della massa tumorale. La matrice extracellulare, la particolare organizzazione del tessuto neoplastico e l’aumento della pressione interstiziale possono ostacolare la diffusione delle molecole. Anche la vascolarizzazione dei tumori solidi è spesso irregolare, con conseguenze sulla distribuzione del farmaco.
Un ulteriore problema è l’eterogeneità antigenica. Le cellule appartenenti allo stesso tumore possono infatti esprimere quantità differenti dell’antigene bersaglio e alcune possono esserne completamente prive. Queste cellule possono quindi sfuggire all’azione dell’immunotossina e contribuire alla persistenza della malattia.
La riduzione delle dimensioni delle immunotossine ricombinanti può favorire la penetrazione nei tessuti, ma non risolve da sola tutti questi problemi. Per questo motivo la ricerca si concentra anche sulla scelta di nuovi bersagli, sull’ingegnerizzazione delle molecole e sul miglioramento della loro distribuzione nell’organismo.
Principali ostacoli e effetti indesiderati
Lo sviluppo clinico delle immunotossine ha evidenziato anche importanti problemi di tossicità e immunogenicità.
Uno degli effetti indesiderati storicamente associati ad alcune immunotossine è la sindrome da perdita capillare (vascular leak syndrome, VLS). Questa condizione è caratterizzata da un aumento della permeabilità dei piccoli vasi sanguigni, con conseguente passaggio di liquidi nei tessuti. Nei casi più gravi può provocare edema, ipotensione e alterazioni della funzione degli organi. Si sono studiate alcune strategie di ingegneria proteica proprio per ridurre l’interazione indesiderata delle immunotossine con le cellule endoteliali.
Un secondo problema è l’immunogenicità. Le tossine batteriche e vegetali utilizzate in molte immunotossine sono proteine estranee all’organismo umano e possono stimolare una risposta immunitaria. Il paziente può quindi sviluppare anticorpi anti-farmaco, capaci di accelerare la rimozione della molecola dall’organismo o di neutralizzarne l’attività. Questo fenomeno può risultare particolarmente problematico quando sono necessarie somministrazioni ripetute.
La ricerca sulle immunotossine mira pertanto non soltanto ad aumentare la potenza citotossica, ma anche a migliorare la selettività, ridurre la tossicità e limitare la risposta immunitaria contro il farmaco.
Vantaggi, limiti e prospettive future
Le immunotossine presentano alcune caratteristiche che le rendono interessanti nell’ambito della terapia antitumorale mirata. Il principale vantaggio è la possibilità di combinare la specificità del riconoscimento molecolare con l’elevata potenza delle tossine. Il dominio di riconoscimento permette infatti di indirizzare la molecola verso cellule che esprimono uno specifico antigene, mentre la componente tossica può provocare un potente effetto citotossico dopo l’internalizzazione. L’impiego di tecniche di ingegneria genetica consente inoltre di modificare le diverse componenti della molecola, adattandone le caratteristiche al bersaglio terapeutico.
Questi vantaggi sono però accompagnati da importanti limiti clinici. Uno dei principali è l’immunogenicità delle tossine di origine batterica o vegetale, che può determinare la formazione di anticorpi contro il farmaco e ridurne l’efficacia nelle somministrazioni successive. Anche la tossicità rappresenta un problema, poiché il bersaglio molecolare può essere espresso, almeno in parte, da cellule sane. A ciò si aggiungono la difficoltà di ottenere una distribuzione uniforme nei tumori solidi, l’eterogeneità dell’espressione degli antigeni e la possibilità che alcune cellule tumorali sviluppino meccanismi di resistenza.
Le prospettive future sono quindi rivolte alla progettazione di immunotossine più selettive, meno immunogene e maggiormente capaci di raggiungere le cellule tumorali. La de-immunizzazione delle tossine, ottenuta modificando le regioni riconosciute dal sistema immunitario, rappresenta una delle strategie studiate per consentire trattamenti ripetuti. Un’altra direzione riguarda l’utilizzo di nuovi domini di riconoscimento e di componenti citotossiche alternative, comprese proteine di origine umana, con l’obiettivo di ridurre le reazioni immunitarie.
Particolare interesse è rivolto anche al miglioramento della penetrazione nei tumori solidi e alla combinazione delle immunotossine con altre forme di terapia antitumorale. L’evoluzione dell’ingegneria proteica potrebbe così permettere di ottenere molecole con proprietà farmacologiche sempre più controllabili, ampliandone le possibili applicazioni terapeutiche.

